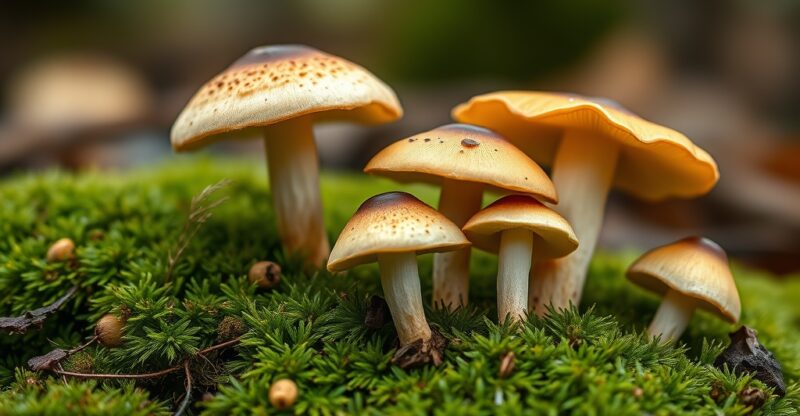
Quatre décennies après la catastrophe nucléaire de Tchernobyl en 1986 et quinze ans après l’accident de Fukushima en 2011, les retombées atmosphériques de radionucléides artificiels continuent de susciter des interrogations légitimes en santé publique environnementale et en nutrition clinique. Parmi les produits de fission rejetés dans l’atmosphère, le césium-137 (137Cs) représente le contaminant à long terme le plus problématique en raison de sa période radioactive physique prolongée (demi-vie de 30,17 ans), de son émission conjointe de rayonnements bêta et gamma pénétrants et de sa remarquable mobilité biologique. Alors que les terres agricoles arables labourées ont vu leur contamination de surface diminuer au fil des années par lessivage et fixation sur les argiles profondes, les écosystèmes forestiers non perturbés se comportent comme de véritables pièges écologiques perpétuels. Au sein de cet environnement sylvestre, les champignons supérieurs sauvages (macromycètes) manifestent une capacité stupéfiante de bioaccumulation du radiocésium, affichant des niveaux de radioactivité spécifiques pouvant dépasser de plusieurs dizaines à plusieurs centaines de fois ceux des végétaux environnants. Cette captation élective repose sur un phénomène biochimique fondamental : le mimétisme ionique parfait entre le cation césium monovalent (Cs+) et le potassium (K+), substrat physiologique vital avidement absorbé par le réseau mycélien souterrain.
L’analogie alcaline : le césium dans le sillage du potassium
Pour comprendre comment le césium s’infiltre dans la matière vivante, il est indispensable de se référer à la colonne des métaux alcalins du tableau périodique (groupe 1). Le césium (Cs+) partage avec le potassium (K+) une valence monovalente stricte et un comportement d’acide de Lewis très dur : * Le rayon ionique du césium hydraté (1,69 Å) est extrêmement proche de celui du potassium (1,33 Å à l’état nu, mais de dimension quasi superposable une fois entouré de sa sphère d’hydratation aqueuse). * En raison de cette parenté stérique et de sa charge électrostatique unitaire, les systèmes de transport transmembranaire des cellules vivantes ne parviennent pas à discriminer parfaitement l’ion Cs+ de l’ion K+.
Dans le sol forestier, le césium-137 déposé par les panaches radioactifs est retenu dans les couches organiques superficielles : la litière d’aiguilles et de feuilles en décomposition (horizon OL/OF) et l’humus riche en acides humiques et fulviques (horizon OH), précisément là où s’épanouit le mycélium des champignons mycorhiziens et saprophytes.
Le mycélium fongique : un réseau d’absorption potassique suractivé
Les champignons ne possèdent pas de racines : ils explorent le sol grâce à un réseau souterrain gigantesque de filaments microscopiques appelés hyphes, formant le mycélium.
Le métabolisme fongique est caractérisé par une exigence colossale en potassium. Le potassium est le cation intracellulaire prédominant chez les champignons, indispensable à la génération de la pression de turgescence hydrostatique (qui permet la croissance apicale des hyphes à travers la terre meuble), à l’activation des enzymes glycolytiques et au maintien du potentiel de repos membranaire.
Pour capter le potassium dans un milieu forestier naturellement acide et pauvre en nutriments minéraux, le mycélium exprime une densité impressionnante de transporteurs membranaires de haute affinité : * Les transporteurs de potassium de haute affinité de type HAK/KUP/KT (H+/K+ symporteurs). * Les canaux potassiques à rectification entrante fongiques.
Ces transporteurs possèdent une affinité pour le cation césium (Cs+) presque équivalente à leur affinité pour le potassium : * Le symporteur fongique capte l’ion Cs+ présent à l’état de trace dans la solution interstitielle du sol et le propulse activement contre gradient dans le cytoplasme des hyphes. * Une fois internalisé, le césium n’est pas excrété : il est acheminé le long des hyphes mycéliens par flux cytoplasmique rapide vers les primordiums de fructification lors de l’apparition des carpophores (le chapeau et le pied du champignon visible en surface). * Au sein du sporophore, le césium se concentre préférentiellement dans les tissus à renouvellement et division active : l’hyménium fertile (les lames, les tubes ou les aiguillons portant les spores reproductrices) et la cuticule du chapeau, où les concentrations en radiocésium sont deux à trois fois plus élevées que dans le pied.
ICCHM 2026 · 1re édition · 12–13 déc. 2026
Congrès International des Contaminants et Métaux Lourds
Deux jours d'immersion clinique pour transformer votre pratique en santé environnementale : protocoles de chélation validés, études de cas réels et détoxification intégrative.
- Lieu : Novotel Paris Eiffel · présentiel & en ligne
- Format : 16 h de formation certifiante + replays 180 jours
- Thèmes : Métaux lourds · chélation · PFAS · perturbateurs endocriniens · mycotoxines
 Paris12 – 13 DécembreICCHM.ORGicchm.org
Gradient d’accumulation selon les espèces : des bioaccumulateurs majeurs aux espèces d’épargne
Toutes les espèces de champignons sauvages n’accumulent pas le césium-137 avec la même intensité. Le facteur de transfert sol-champignon varie de façon spectaculaire selon la profondeur de prospection du mycélium et la physiologie spécifique du champignon : * Espèces à très forte bioaccumulation (accumulateurs critiques) : – Le bolet bai (Imleria badia, anciennement Xerocomus badius) : le champion incontesté de l’accumulation en Europe centrale et occidentale, dont le mycélium superficiel prospecte directement la couche d’humus organique où le césium-137 est le plus concentré. Ses teneurs peuvent dépasser plusieurs milliers de becquerels par kilogramme frais dans les zones ayant reçu d’importantes retombées pluvieuses en mai 1986. – Les cortinaires, en particulier le cortinaire ridé (Cortinarius caperatus, autrefois Rozites caperata) et le cortinaire violet (Cortinarius violaceus). – Le pied-de-mouton (Hydnum repandum) et la fausse truffe (Elaphomyces granulatus, très prisée des sangliers). * Espèces à accumulation modérée : les chanterelles communes (Cantharellus cibarius), les trompettes-de-la-mort (Craterellus cornucopioides) et les cèpes de Bordeaux (Boletus edulis), dont le mycélium mycorhizien plonge plus profondément dans les horizons minéraux du sol où le césium est plus fortement fixé et dilué. * Espèces d’épargne (très faible accumulation) : les champignons de culture sur substrat contrôlé (champignons de Paris / Agaricus bisporus, pleurotes / Pleurotus ostreatus, shiitaké / Lentinula edodes), dont les niveaux de radiocésium sont pratiquement nuls ou indétectables, garantissant une innocuité totale pour le consommateur.
De l’assiette aux tissus : pharmacocinétique humaine du césium-137
Lorsqu’un être humain consomme un plat de champignons sauvages contaminés, le radiocésium soluble libéré lors de la digestion gastrique est absorbé de manière quasi intégrale (biodisponibilité entérale supérieure à 95-98 %) au niveau du jéjunum et de l’iléon, empruntant les mêmes cotransporteurs et canaux que le potassium alimentaire.
Une fois dans la circulation générale, le césium reproduit fidèlement la cinétique de distribution du potassium : * Diffusion tissulaire homogène : le césium pénètre dans toutes les cellules de l’organisme grâce à la Na+/K+-ATPase basolatérale, qui l’internalise avec une efficacité remarquable. * Tropisme musculaire prédominant : environ 80 % de la charge corporelle totale en césium se loge dans la masse musculaire striée squelettique et le myocarde, tissus les plus denses en potassium de l’organisme. Le reste se répartit dans le foie, les reins et le cerveau. * Radiotoxicité interne : le césium-137 émetteur bêta et gamma délivre une irradiation interne continue et homogène sur l’ensemble des tissus mous de l’organisme, augmentant le risque stochastique de mutations somatiques, de cassures chromosomiques de l’ADN et de néoplasies au prorata de la dose efficace engagée (en sieverts). * Demi-vie biologique : chez l’adulte, la clairance du césium-137 est relativement lente, répondant à un modèle biphasique avec une demi-vie biologique d’élimination moyenne comprise entre 70 et 110 jours (plus courte chez l’enfant et la femme, plus longue chez l’homme à forte masse musculaire).
L’élimination corporelle est assurée à 80-85 % par voie rénale dans les urines et à 15-20 % par voie fécale via les sécrétions digestives réabsorbées.
Conseils culinaires et stratégies d’élimination au cabinet
Pour les amateurs de cueillette sylvestre et les populations résidant dans des territoires sous surveillance radiologique : * Recommandation sur la fréquence de consommation : limiter la consommation de champignons sauvages bioaccumulateurs (bolet bai, pied-de-mouton) à un ou deux repas par mois en saison, et privilégier une diversification avec des espèces à faible transfert ou des champignons cultivés. * Techniques culinaires de décontamination par lessivage : – Comme le césium est un ion monovalent hautement hydrosoluble (tout comme le potassium), le blanchiment préalable des champignons dans une grande quantité d’eau bouillante salée pendant 10 à 15 minutes permet d’extraire entre 50 et 80 % du césium-137 contenu dans les chairs. – Consigne capitale : l’eau de cuisson de blanchiment doit impérativement être jetée et ne jamais être réutilisée pour des sauces, bouillons ou soupes. La cuisson à la poêle directe ou le séchage déshydraté concentre au contraire la radioactivité volumique sans rien éliminer. * Prise en charge médicale des contaminations aiguës massives : l’antidote spécifique de choix est le bleu de Prusse insoluble (Radiogardase, hexacyanoferrate ferrique) administré par voie orale (3 grammes trois fois par jour). Dans la lumière intestinale, le bleu de Prusse échange ses ions potassium contre les ions césium issus de la sécrétion biliaire et pancréatique, formant un précipité insoluble éliminé dans les selles et réduisant la demi-vie biologique du césium de plus de 60 à 70 %. * Soutien nutritionnel : le maintien d’un apport alimentaire abondant et continu en potassium physiologique (fruits frais, légumes racines, légumineuses) sature les récepteurs tissulaires et accélère l’excrétion rénale compétitive du césium circulant.